Supporting material
Documents and resources
The sources behind each Aequorea video: scientific papers, Nobel lectures, open textbook chapters and our own maps, organised by video and topic. Every document carries its full citation; those hosted here show their licence, and third-party ones link to their original publication.
Loading document…
Your browser cannot display the PDF directly.
Download documentDocument text
Todo lo que verás describe la traducción en procariotas, específicamente Escherichia coli . Los eucariotas usan un ribosoma más grande (80S, formado por las subunidades 40S y 60S), reconocen el inicio del mensaje por su extremo 5 ′ en vez de por la secuencia Shine-Dalgarno, empiezan con metionina sin formilar y necesitan más factores de iniciación. Cuando no se indique el organismo, asume procariota.
Antes de empezar
Las piezas de la traducción y sus seis pasos, uno por diapositiva: el reconocimiento del mensaje, la iniciación, la lectura del codón, el enlace peptídico, la translocación y la terminación. Más la molécula que resulta del proceso.
En este documento
Cómo el ribosoma convierte una secuencia de bases en una cadena de aminoácidos. Todo el proceso en procariotas, E. coli como modelo. Del mensaje a la proteína
Dogma central
La mayoría de los aminoácidos tiene más de un codón. La leucina tiene seis; el triptófano, uno solo. Casi siempre los codones de un mismo aminoácido difieren en la tercera base, así que muchas mutaciones en esa posición no cambian la proteína. El código es prácticamente el mismo en todos los organismos, con pocas excepciones, varias de ellas en las mitocondrias.
La redundancia
Con dos bases por codón solo habría 16 combinaciones, que no alcanzan para 20 aminoácidos. Tres es el número mínimo que cubre todos, y deja combinaciones de sobra.
Por qué tres bases
Con cuatro bases en grupos de tres hay 64 combinaciones posibles. De ellas, 61 codifican aminoácidos y tres (UAA, UAG y UGA) marcan el final de la proteína. El codón AUG cumple dos funciones: codifica metionina y señala el inicio de la lectura.
El código genético
El ARN mensajero (ARNm) escribe con cuatro bases y la proteína se construye con veinte aminoácidos. La célula lee el ARNm en grupos de tres bases llamados codones . 64T raducir entre dos alfabetos codones para 20 aminoácidos
El problema
La tercera base del codón se aparea con menos rigidez que las dos primeras, y un mismo anticodón puede reconocer varios codones que solo difieren en esa posición. Por eso E. coli lee sus 61 codones con menos de 50 tipos de ARNt.
El bamboleo
Existe una aminoacil-ARNt sintetasa por cada aminoácido. Cada una reconoce su aminoácido y los ARNt que le corresponden, y los une gastando ATP. Muchas tienen un sitio de corrección que hidroliza el aminoácido si es el equivocado. El ribosoma solo comprueba el apareamiento entre codón y anticodón: si un ARNt llega cargado con el aminoácido incorrecto, ese aminoácido entra en la proteína. La traducción del código ocurre en las sintetasas.
Las sintetasas
Un ARNt mide entre 73 y 93 nucleótidos y se pliega en forma de L. El anticodón está en el asa de un extremo; el aminoácido se une al extremo 3 ′, que termina siempre en la secuencia CCA. Entre ambos hay unos 7 nanómetros.
La estructura
Cada ARN de transferencia (ARNt) lleva en un extremo un anticodón que se aparea con el codón, y en el otro el aminoácido que le corresponde. La aminoacil-ARNt sintetasa se encarga de cargarlo. ARN de transferenciaLa pieza que traduce
Las piezas
La S mide velocidad de sedimentación en una ultracentrífuga, que depende de la masa y también de la forma. Por eso los valores no se suman: una subunidad 30S y una 50S forman un ribosoma 70S.
La unidad svedberg
El sitio A (aminoacil) recibe cada ARNt cargado que llega. El sitio P (peptidil) sostiene el ARNt que lleva la cadena en crecimiento. El sitio E (salida) aloja el ARNt vacío antes de que abandone el ribosoma. Cada ARNt recorre los tres en ese orden.
Los tres sitios
La subunidad 30S contiene el ARN ribosómico 16S y 21 proteínas. La 50S contiene los ARN ribosómicos 23S y 5S, y unas 33 proteínas. Dos tercios de la masa del ribosoma son ARN.
La composición
Las subunidades 30S y 50S se ensamblan en el ribosoma 70S. Dentro hay tres sitios por donde pasan los ARNt: A, P y E . Ribosoma 70SEl ribosoma
Las piezas
John Shine y Lynn Dalgarno secuenciaron en 1974 el extremo 3 ′ del ARN ribosómico 16S de E. coli y propusieron que se apareaba con una secuencia presente en los ARNm, justo antes del codón de inicio.
De dónde viene el nombre
Un ARNm contiene muchos AUG, y la mayoría codifica metionina dentro de la proteína. La secuencia Shine-Dalgarno marca cuál de ellos es el inicio. Los ARNm bacterianos suelen llevar varios genes seguidos, cada uno con su propia secuencia Shine-Dalgarno, así que un mismo mensaje puede tener varios puntos de inicio. En bacterias, el inicio también puede ser GUG o UUG.
Por qué hace falta
La secuencia Shine-Dalgarno es rica en purinas, con un consenso cercano a AGGAGG, y se encuentra entre cinco y diez nucleótidos antes del codón de inicio. Es complementaria al extremo 3 ′ del ARN ribosómico 16S. El apareamiento entre ambas coloca el AUG justo en la posición del sitio P.
El mecanismo
La secuencia Shine-Dalgarno del ARNm se aparea con el ARN ribosómico 16S de la subunidad 30S. Esa unión deja el codón de inicio AUG en su lugar. Subunidad 30SEncontrar el inicio
Paso 1 de 6
Los neutrófilos humanos tienen receptores que detectan péptidos con formilmetionina y los interpretan como señal de infección bacteriana. Las mitocondrias también inician sus proteínas con formilmetionina, así que el daño mitocondrial puede liberar esos péptidos y activar una respuesta inflamatoria sin que haya bacterias.
La conexión
Es una metionina con un grupo formilo añadido, que se agrega cuando el aminoácido ya está unido al ARNt iniciador. Ese grupo distingue al ARNt que inicia la lectura del que coloca metioninas dentro de la proteína. Terminada la síntesis, una desformilasa retira el formilo, y en muchas proteínas una aminopeptidasa retira también la metionina.
La formilmetionina
Tres factores de iniciación preparan el ensamblaje. IF3 impide que la subunidad 50S se una antes de tiempo, IF1 ocupa el sitio A e IF2, unido a GTP, coloca el ARNt iniciador. Cuando llega la subunidad 50S, IF2 hidroliza su GTP y los tres factores se retiran. El ARNt iniciador es el único que entra directamente al sitio P; todos los demás llegan por el sitio A.
El mecanismo
Sobre el AUG se coloca un ARNt especial que lleva formilmetionina . Después se une la subunidad 50S y se forma el ribosoma 70S completo. ARNt iniciadorLa iniciación
Paso 2 de 6
Varios antibióticos actúan sobre este paso. Las tetraciclinas impiden que el ARNt entre al sitio A. Los aminoglucósidos, como la estreptomicina, se unen al centro de decodificación y provocan errores de lectura. Su efecto es de toxicidad selectiva: el ribosoma bacteriano difiere del ribosoma citoplasmático humano, pero las mitocondrias conservan ribosomas parecidos a los bacterianos, y eso explica parte de la toxicidad auditiva de los aminoglucósidos.
La conexión
El ribosoma revisa el apareamiento dos veces: antes de que EF-Tu hidrolice el GTP y después. Un ARNt incorrecto tiene dos oportunidades de soltarse. El resultado es alrededor de un aminoácido equivocado por cada 10⁴, a unos 20 aminoácidos por segundo.
La doble comprobación
EF-Tu, unido a GTP, transporta el ARNt cargado. En el centro de decodificación de la subunidad 30S, dos bases del ARN ribosómico 16S (A1492 y A1493) inspeccionan la geometría de los dos primeros pares entre codón y anticodón. Un apareamiento correcto cambia la forma del ribosoma, EF-Tu hidroliza su GTP y se retira, y el ARNt se acomoda en el sitio A.
El mecanismo
El factor EF-Tu lleva cada ARNt cargado al sitio A. Si el anticodón se aparea con el codón, el ARNt se queda; si no, se retira. Factor EF-T uLeer el codón
Paso 3 de 6
El cloranfenicol se une al centro peptidil transferasa y bloquea la formación del enlace. También inhibe la síntesis de proteínas en las mitocondrias humanas, lo que contribuye a la supresión de médula ósea que limita su uso clínico.
La conexión
El catalizador del enlace peptídico es el ARN ribosómico 23S. En el año 2000, Nissen y sus colaboradores resolvieron la estructura de la subunidad grande y mostraron que no hay cadenas laterales de proteína a menos de unos 18 Å del enlace que se forma. El ribosoma es una ribozima, y ese hallazgo apoya la hipótesis de que el ARN catalizaba reacciones antes de que existieran las proteínas.
Una enzima hecha de arn
El grupo amino del aminoácido que está en el sitio A ataca el enlace éster que une la cadena al ARNt del sitio P. La cadena queda unida al aminoácido nuevo, crece en una unidad y ahora cuelga del ARNt del sitio A. El ARNt del sitio P queda vacío.
El mecanismo
En la subunidad 50S, el centro peptidil transferasa forma el enlace peptídico. La cadena pasa del ARNt del sitio P al aminoácido del sitio A. Centro peptidil transferasaUnir los aminoácidos
Paso 4 de 6
A unos 20 aminoácidos por segundo, E. coli sintetiza una proteína de 300 aminoácidos en unos 15 segundos. EF-Tu, que interviene en cada ciclo, es una de las proteínas más abundantes de la célula. El ácido fusídico, un antibiótico, bloquea este paso al dejar a EF-G atrapado sobre el ribosoma.
La velocidad
Cada aminoácido añadido consume el equivalente a cuatro enlaces fosfato de alta energía: dos en la carga del ARNt por la sintetasa, uno en el GTP de EF-Tu y uno en el GTP de EF-G. La síntesis de proteínas es uno de los procesos que más energía consume en una bacteria en crecimiento.
El costo
Tras el enlace peptídico, las subunidades giran ligeramente una respecto a la otra y los ARNt quedan en posiciones intermedias entre sitios. EF-G, unido a GTP, se acopla al ribosoma y la hidrólisis del GTP impulsa el desplazamiento del ARNm y de los dos ARNt en un codón. El sitio A queda libre para el siguiente ARNt.
El mecanismo
El factor EF-G usa la energía del GTP para mover el ribosoma exactamente tres bases . El ARNt del sitio P pasa al E y sale; el del sitio A pasa al P. Factor EF-GAvanzar un codón
Paso 5 de 6
El cambio de una sola base puede convertir un codón de aminoácido en uno de terminación. El ribosoma se detiene antes de tiempo y la proteína sale incompleta. Una parte de los casos de fibrosis quística y de distrofia muscular de Duchenne se debe a este tipo de mutación.
Las mutaciones sin sentido
RF3, unido a GTP, retira al factor de liberación. Después, el factor de reciclaje del ribosoma y EF-G separan las subunidades, e IF3 se une a la 30S para mantenerlas separadas hasta la siguiente ronda de iniciación.
El reciclaje
RF1 reconoce los codones UAA y UAG; RF2 reconoce UAA y UGA. El factor ocupa el sitio A y se extiende desde el centro de decodificación hasta el centro peptidil transferasa, donde un motivo de tres aminoácidos (GGQ) coloca una molécula de agua. El agua hidroliza el enlace que une la cadena al ARNt del sitio P, y la proteína queda libre.
El mecanismo
Los codones UAA, UAG y UGA no tienen ARNt. Cuando uno llega al sitio A entra un factor de liberación , y el centro peptidil transferasa suelta la cadena. Factores de liberaciónLa terminación
Paso 6 de 6
La secuencia de aminoácidos es la estructura primaria. Para funcionar, la cadena tiene que plegarse en su estructura tridimensional, y muchas proteínas necesitan además modificaciones o asociarse con otras cadenas.
Lo que falta
Un ribosoma no necesita terminar para que otro empiece: en cuanto el primero se aleja del inicio, el siguiente puede unirse a la misma secuencia Shine-Dalgarno. Sumado a la transcripción acoplada de la carpeta 3, un solo ARNm puede estar sintetizándose por un extremo y siendo traducido por varios ribosomas al mismo tiempo.
El polisoma
La cadena atraviesa la subunidad 50S por un túnel de unos 100 Å de largo, que aloja entre 30 y 40 aminoácidos. El plegamiento puede empezar ahí dentro, y al salir la recibe una chaperona llamada factor desencadenante. Los macrólidos, como la eritromicina, se unen al túnel y bloquean el paso de la cadena.
El túnel de salida
Una cadena de aminoácidos
El resultado
La cadena sale por un túnel de la subunidad 50S y empieza a plegarse. Varios ribosomas leen el mismo ARNm a la vez: un polisoma .
- Alberts, B., Heald, R., Johnson, A., Morgan, D., Raff, M., Roberts, K. y Walter, P. (2022). Molecular biology of the cell (7.ª ed.). W. W. Norton & Company. - Nelson, D. L., Cox, M. M. y Hoskins, A. A. (2021). Lehninger principles of biochemistry (8.ª ed.). W. H. Freeman. - Nissen, P., Hansen, J., Ban, N., Moore, P. B. y Steitz, T. A. (2000). The structural basis of ribosome activity in peptide bond synthesis. Science, 289(5481), 920–930. https://doi.org/10.1126/science.289.5481.920 - Rodnina, M. V. (2018). Translation in prokaryotes. Cold Spring Harbor Perspectives in Biology, 10(9), a032664. https://doi.org/10.1101/cshperspect.a032664 - Shine, J. y Dalgarno, L. (1974). The 3 ′-terminal sequence of Escherichia coli 16S ribosomal RNA: Complementarity to nonsense triplets and ribosome binding sites. Proceedings of the National Academy of Sciences of the United States of America, 71(4), 1342–1346. https://doi.org/10.1073/pnas.71.4.1342
Referencias
El minijuego interactivo del dogma central está en aequorea.net, junto con el resto de recursos descargables de la serie. El video completo desarrolla cada uno de estos pasos con animación en 3D.
Para seguir estudiando
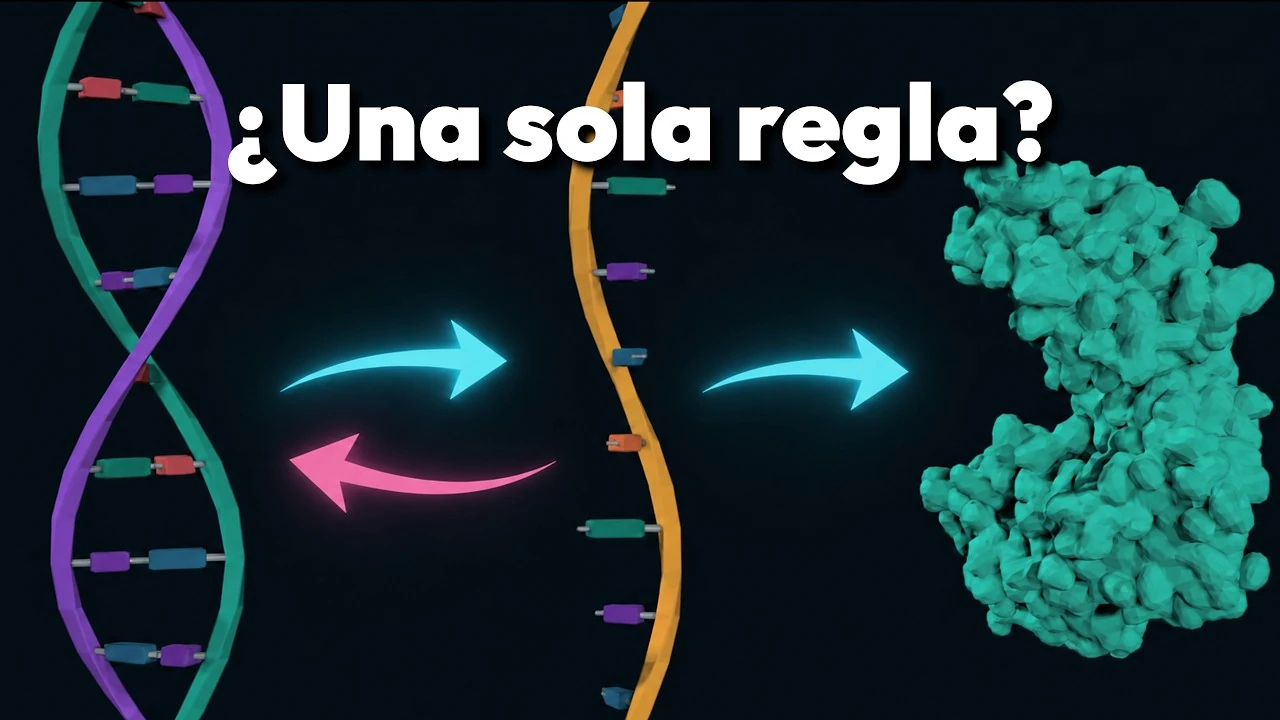
La información nació en el ADN, pasó por el ARN y terminó en una proteína, en el sentido que propuso Crick en 1958. La carpeta 5 trata de la excepción: virus capaces de convertir ARN en ADN.
Lo que sigue
El proceso completo, animado y explicado a fondo, en el video del Dogma Central. El ciclo secompleta